Este artículo analiza el trabajo How snake embryos coil, publicado en Current Biology el 21 de septiembre de 2026 por un equipo del Museo Canadiense de la Naturaleza, la Universidad de Carleton, California State University Los Ángeles y la Universidad de Helsinki.
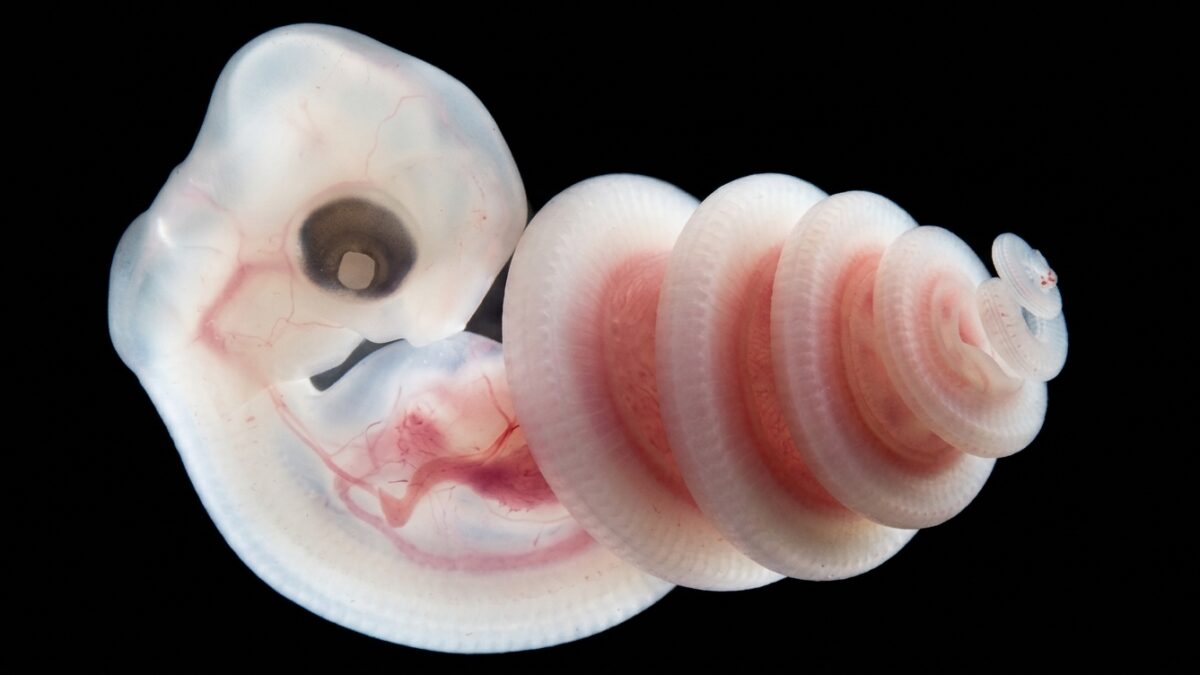
Cualquiera que haya abierto un huevo de serpiente infértil, o que haya visto fotografías de embriones en desarrollo, conoce la imagen: el embrión aparece enrollado en una espiral apretada, como un muelle. Es una de las estampas más reconocibles de la embriología de reptiles. Y, sorprendentemente, nadie había estudiado nunca por qué ocurre.
Un equipo dirigido por Alexandra Weber y Tetsuto Miyashita acaba de llenar ese hueco examinando 913 embriones individuales de 39 especies de serpientes y otros escamosos ápodos, procedentes de colecciones de museo de Norteamérica y Europa y de poblaciones de laboratorio. El resultado tiene dos partes: un patrón muy llamativo y una explicación mecánica bastante elegante.
El patrón: casi siempre hacia la derecha
El sentido de enrollamiento de un embrión solo admite dos posibilidades: dextral (en el sentido de las agujas del reloj) o sinistral (al contrario). En la mayoría de las especies animales con este tipo de rasgos, la dirección puede estar fijada, sesgada o repartida al azar.
En serpientes, los embriones tempranos están fijados. Y lo están de forma casi absoluta. En Boaedon capensis, la serpiente casera africana, los autores contabilizaron 146 embriones tempranos dextrales y ninguno sinistral. En el maizero (Pantherophis guttatus), 193 frente a 9. Ninguna especie muestreada en fases tempranas presentó sesgo sinistral ni distribución aleatoria.
913 embriones examinados.
39 especies de 13 familias.
865 observaciones corresponden a serpientes; 48 a otros escamosos ápodos.
98,6 % de los embriones tempranos de serpiente presentan enrollamiento completo y consistente.
65 % de dextralidad media considerando todas las fases juntas.
El contraste con los lagartos ápodos es revelador. Los embriones de Anguis fragilis, Chalcides chalcides o los gimnoftálmidos fosoriales no muestran ningún sesgo direccional apreciable. El enrollamiento dextral parece, por tanto, un rasgo propio del grupo corona de las serpientes, no una consecuencia genérica de tener cuerpo alargado y carecer de patas.
La explicación: un intestino que no sigue el ritmo
Aquí está lo interesante. Las serpientes generan más de 300 somitos durante el desarrollo embrionario gracias a un reloj de segmentación acelerado. Producen aproximadamente cinco veces más somitos que un amniota convencional, y lo hacen en un tercio de las dimensiones.
El tubo digestivo, en cambio, no puede acelerarse de la misma manera: crece por extensión de un tubo que además debe diferenciarse regionalmente en órganos distintos. El resultado es un desfase temporal considerable. En fases tempranas de B. capensis, el tracto gastrointestinal mide menos del 20 % de la longitud precloacal del embrión.
El eje corporal, por tanto, crece a toda velocidad mientras el intestino se queda atrás. Y como el intestino está anclado por delante (estómago y vasos vitelinos) y por detrás (genitales y cloaca), actúa como freno. El cuerpo, que no puede extenderse en línea recta, se pandea y se enrolla.
El «pilar visceral»
La microtomografía computarizada permitió a los autores ver cómo se organiza todo esto por dentro. En un embrión de 6-7 días tras la puesta, el tracto digestivo, junto con los vasos alantoideos y vitelinos, forma una estructura vertical —los autores la llaman pilar visceral— alrededor de la cual se enrolla el cuerpo.
Es decir: el intestino no está integrado en el eje corporal, sino físicamente desacoplado de él, suspendido por el mesenterio en el centro de la espiral. Los grandes vasos del pilar se enrollan en el mismo sentido y con el mismo número de vueltas que el tronco que los rodea. Hasta donde se sabe, esta estructura es exclusiva de los embriones tempranos de serpiente.
Piense en una cuerda que se enrolla alrededor de un poste. El poste es el intestino, todavía corto y anclado por sus dos extremos. La cuerda es el cuerpo, que crece mucho más deprisa y no tiene hacia dónde ir si no es rodeándolo. El mismo principio de crecimiento diferencial explica los bucles del intestino en pollos y ratones, la válvula espiral de las rayas o el rizado de los zarcillos del pepino.
¿Y por qué hacia la derecha?
La respuesta parece ser puramente geométrica, y tiene que ver con el vitelo. En escamosos, la masa vitelina queda fijada al lado izquierdo del embrión. A medida que este crece, se «hunde» en ella: el lado izquierdo de la cabeza queda presionado contra el vitelo y el tronco se enrolla alejándose de él. Ese movimiento, por pura posición, resulta dextral.
El dato que respalda la hipótesis es indirecto pero convincente. En gallinas, entre el 1,7 % y el 5 % de los embriones se desarrollan en posición invertida respecto al vitelo, según cómo se incube el huevo. Esa frecuencia es muy parecida al 4,6 % de enrollamiento sinistral registrado en embriones tempranos de maizero.
Conviene subrayar una conclusión de los propios autores: el sentido del enrollamiento no parece conferir ninguna ventaja selectiva. Se trata, con toda probabilidad, de un rasgo no adaptativo, un subproducto geométrico de cómo interactúan tejidos que crecen a distintas velocidades.
0 dpo — Los miotomos están delimitados dentro de los segmentos somíticos. El enrollamiento dextral ya está establecido en el momento de la puesta.
4-5 dpo — Los miotomos se diferencian en componentes epaxiales e hipaxiales. El tracto gastrointestinal sigue midiendo menos del 20 % de la longitud precloacal.
6-7 dpo — La microtomografía muestra el pilar visceral plenamente formado: intestino y vasos alantoideos y vitelinos girando en el mismo sentido que el tronco que los rodea.
9-10 dpo — Las fibras del longissimus dorsi empiezan a cruzar hacia segmentos vecinos. El corazón permanece aún próximo a la región faríngea.
11-12 dpo — Se diferencian los complejos hipaxiales costo-abdominal y escutal-interescutal, y comienzan a formarse los elementos endocondrales de la columna vertebral. El embrión adquiere movilidad. El intestino ha triplicado su longitud desde los 5-6 dpo.
18-19 dpo — El tracto digestivo queda integrado con el eje corporal, con una longitud corporal ligeramente inferior a 90 mm. El enrollamiento se afloja y el sentido pasa a ser variable.
Las fases tardías: se relaja la disciplina
El patrón cambia por completo en el último tramo del desarrollo. En embriones tardíos, la dextralidad deja de ser significativa en todas las especies analizadas, y casi la mitad (48,8 %) presentan espirales incompletas o inconsistentes.
Dos cosas ocurren simultáneamente. La primera: el intestino alcanza al cuerpo. Entre los 5-6 y los 10-12 días tras la puesta en B. capensis, el tracto triplica su longitud, y hacia los 18-19 días queda ya integrado con el eje corporal. La segunda: la musculatura axial madura.
Los miotomos se diferencian en componentes epaxiales e hipaxiales, las fibras del longissimus dorsi empiezan a cruzar hacia segmentos vecinos hacia los 9-10 días, y hacia los 11-12 días se forman los elementos endocondrales de la columna. El embrión, en definitiva, adquiere movilidad. Y en cuanto puede moverse, se recoloca.
De ahí que aparezcan casos como el de una Python regius tardía que ocupa una depresión amplia en el vitelo y enrolla la cola en sentido sinistral, opuesto al de las fases tempranas. O el de una puesta completa de siete embriones tardíos de Crotalus oreganus, todos sinistrales, lo que sugiere un efecto genético más que un simple recolocado.
El estudio no detectó diferencias apreciables entre especies ovíparas y vivíparas, ni en el sesgo dextral temprano ni en su relajación posterior. Los mecanismos del enrollamiento parecen compartidos con independencia del modo reproductivo.
Qué implica esto para quien cría serpientes
La lectura práctica más directa es una advertencia contra la sobreinterpretación. Si al abrir un huevo infértil o al examinar un embrión muerto se observa un enrollamiento «invertido», no hay motivo para leerlo como indicio de malformación o de mala incubación. La propia dirección del enrollamiento carece de valor adaptativo conocido.
Hay, además, una advertencia metodológica que los autores asumen con honestidad. La manipulación del embrión introduce artefactos: en varias figuras del trabajo se documentan espirales que colapsaron al extraer el ejemplar del huevo, o hélices aplanadas en un plano durante la fijación. Los propios autores registraron un 12,8 % de errores de puntuación en embriones tardíos con enrollamiento laxo, aunque sin sesgo direccional.
Y queda abierta la cuestión de fondo. El estudio establece una correlación anatómica sólida, pero no demuestra causalidad: comprobar si las tensiones mecánicas bastan por sí solas para generar la hélice exigiría manipular embriones vivos, algo que hoy resulta inviable. Los huevos de escamosos son blandos, y abrirlos altera de golpe presión hidrostática, tensión de membranas, equilibrio hídrico y soporte vitelino. Para cuando la puesta se produce, el enrollamiento ya está establecido.
Una pieza más del rompecabezas del cuerpo serpentiforme
Conocíamos bien las bases genéticas del plan corporal de las serpientes: el código Hox axial, la pérdida progresiva de función de los potenciadores de extremidades, la regulación temporal del reloj de segmentación. Este trabajo añade una capa distinta y menos explorada, la de la interacción física entre tejidos que crecen a destiempo.
Su conclusión más sugerente es que el enrollamiento no es solo una consecuencia de la elongación axial, sino también un mecanismo que la hace posible. Las serpientes resuelven uno de los muchos problemas de fabricar un cuerpo desproporcionadamente largo convirtiendo en solución lo que, de otro modo, sería un conflicto entre órganos que no crecen al mismo ritmo.
Fuente: Weber, A., Watson, G., Arvanitis-Vigneault, A., Mesa, K., Williams, C. E., Di-Poï, N., Diaz, R. E. Jr. & Miyashita, T. (2026). How snake embryos coil. Current Biology 36, 1-10. https://doi.org/10.1016/j.cub.2026.07.078
Los conjuntos de datos originales de las tomografías están depositados en MorphoSource: https://doi.org/10.17602/M2/L905109
Redacción Mundo Faunista
Mundo Faunista es la publicación digital de la Federación FAUNA